生態系が形創る、大いなる生命の風景
生態系が形創る、大いなる生命の風景
個体を越えて生きる 〜月・海流・宿主・世代が創り出す、『拡張された生命』
私たちは通常、一匹の動物や一本の植物を見て、それを一つの生命だと考える。身体は皮膚や外骨格によって外界から区切られ、誕生から死までがその生物の一生である。これは間違いではない。 しかし、生物の生活環を少し長い時間幅で眺めると、個体だけでは説明できない現象が次々に現れる。ある生物の旅は数世代にまたがり、別の生物の発生には宿主が不可欠である。繁殖の日を月が決め、幼生を海流が運び、季節の変化が次世代の姿まで変える。 そこでは環境は、生命を取り囲む単なる背景ではない。生命活動を成立させる仕組みの一部になっている。
本稿では、このように個体の身体と寿命を越え、世代、他の生物、天体の周期、地球規模の物理環境にまで広がって成立する生活環を、比喩的に「拡張された生命」と呼んでみたい。生物を孤立した物体としてではなく、時間と生態系との関係の中で持続する過程として見るための視点である。
ウナギの身体に組み込まれた“月と海流”
ニホンウナギの一生も、個体だけを追っていては理解できない。 ウナギは日本、中国、朝鮮半島などの河川や沿岸域で数年間成長する。 成熟期を迎えると体色や眼、遊泳能力が変化し、川を下って外洋へ出る。 そしてほとんど餌を取らず、蓄えた脂肪を使いながら、数千キロメートル離れた西マリアナ海嶺付近の産卵海域を目指す。
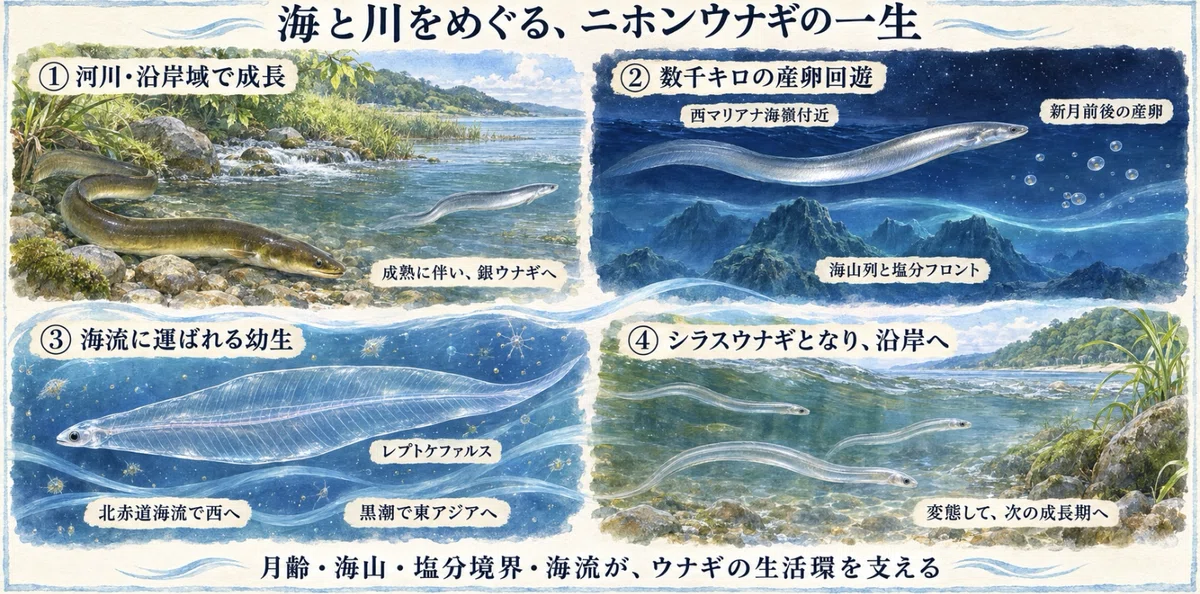
産卵は海山列と塩分フロントが交わる付近で、新月前後に集中する。 海山は地理的な目印となり、塩分の境界は産卵緯度の決定に関係すると考えられている。暗い新月の夜に産卵することは、成魚や卵が捕食者に発見される危険を減らし、広い海に散らばった個体が繁殖時期を合わせるうえでも有利だろう。 孵化した幼生は、成魚を縮小した形ではない。レプトケファルスと呼ばれる、柳の葉のように薄く透明な姿をしている。 幼生は北赤道海流によって西へ運ばれ、その一部が黒潮へ入り、東アジア沿岸に近づくとシラスウナギへ変態する。 つまりウナギの生活環には、河川だけでなく、月齢、海山、塩分境界、北赤道海流、黒潮が組み込まれている。海流が変われば、同じ数の卵が産まれても東アジアへ到達できる幼生の数は変わる。ウナギにとって海流は外部の輸送手段というより、幼生期に一時的に獲得する巨大な「運動器官」のような役割を果たしている。
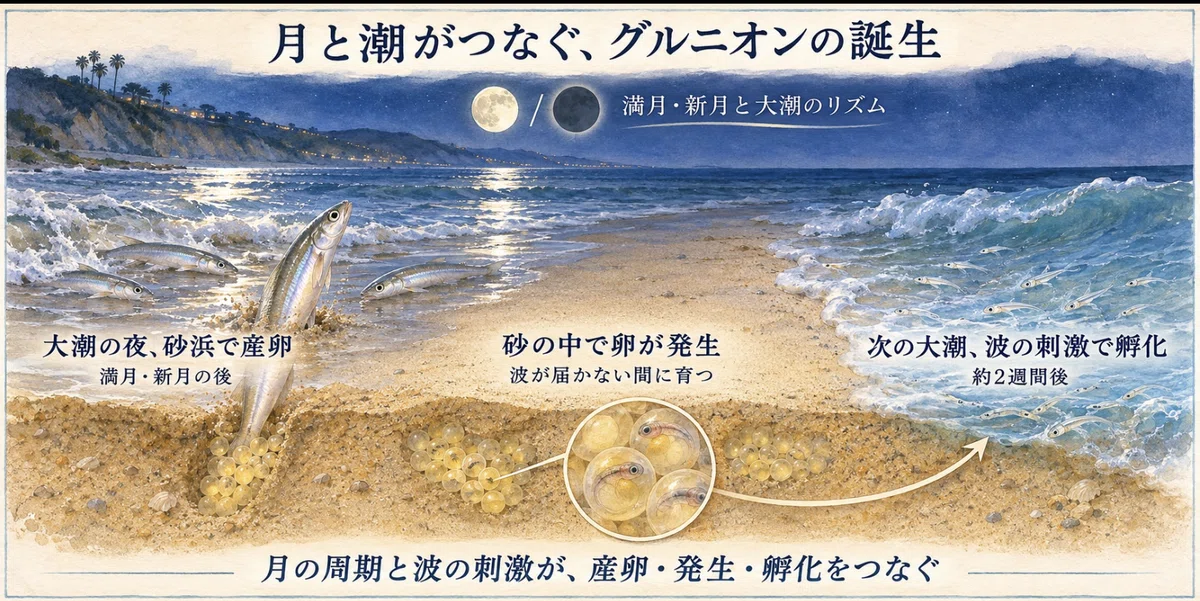
月を生活環に組み込む生物はほかにもいる。 カリフォルニア沿岸の小魚グルニオンは、満月や新月後の大潮に合わせて海から砂浜へ上がり、満潮線近くの砂中に産卵する。 卵は波の届かない場所で発生し、次の大潮で波に洗われたとき、その振動を合図に孵化する。
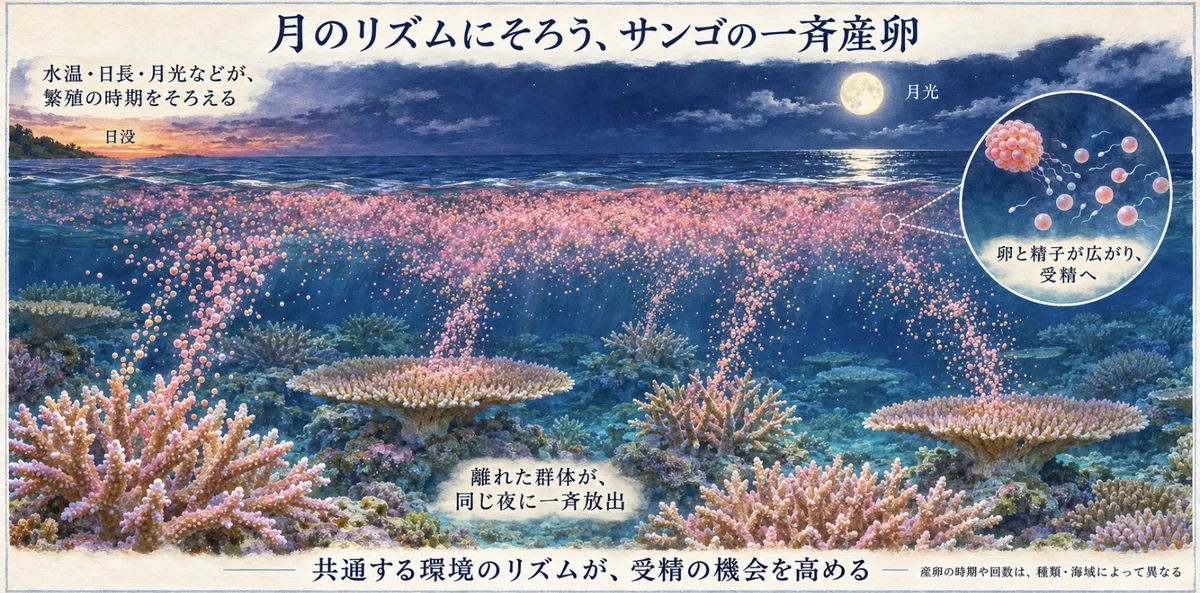
サンゴ礁では、多数のサンゴ群体が水温、日長、日没、月光などを読み取り、年に一度、同じ夜の短時間に卵と精子を一斉放出する。 離れて固定され、互いに相談できない群体が、月という共通時計を利用して受精の機会を最大化しているのである。
“宿主”を「身体の外の器官」として使う
拡張された生命は、物理環境だけでなく他の生物にも及ぶ。 北米に生息するイシガイ科の二枚貝には、外套膜の一部を小魚そっくりに動かす種類がいる。動けない貝が、いわば釣りをするのである。
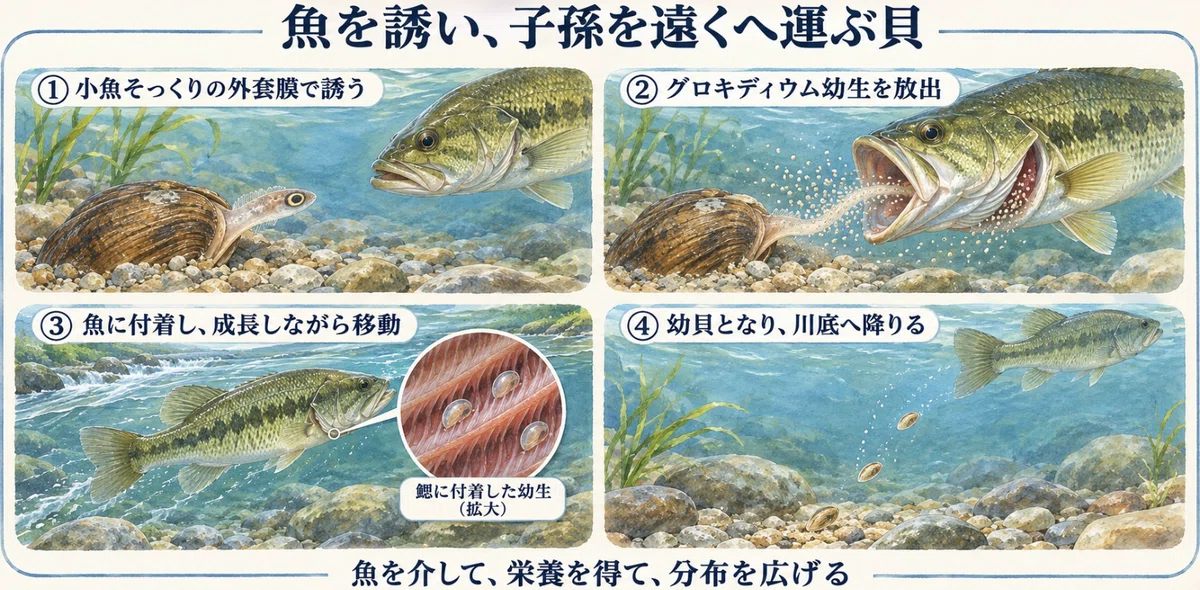
肉食魚が偽物の小魚に襲いかかると、貝はグロキディウム幼生を放出する。 幼生は魚の鰓や鰭に付着して成長し、魚とともに川の上流や別の水域へ運ばれた後、幼貝となって川底へ降りる。 成貝には長距離を移動する能力がない。しかし魚を生活環に組み込むことで、子孫を遠くへ分散させられる。魚は貝の身体ではないが、幼生期の貝にとっては、栄養を供給する胎盤と移動を担う脚を兼ねた存在ともいえる。 ここでは「一個体の能力」と「他の生物を介して実現される能力」を明確に分けることが難しい。
より劇的なのがハリガネムシである。 ハリガネムシはカマキリやコオロギなどの体内で成長するが、成虫が繁殖するには水中へ出なければならない。そこで成熟した寄生虫は宿主の行動を変化させ、水へ入らせる。感染したカマキリが、水面で強く反射される水平偏光に引きつけられることも実験で示されている。
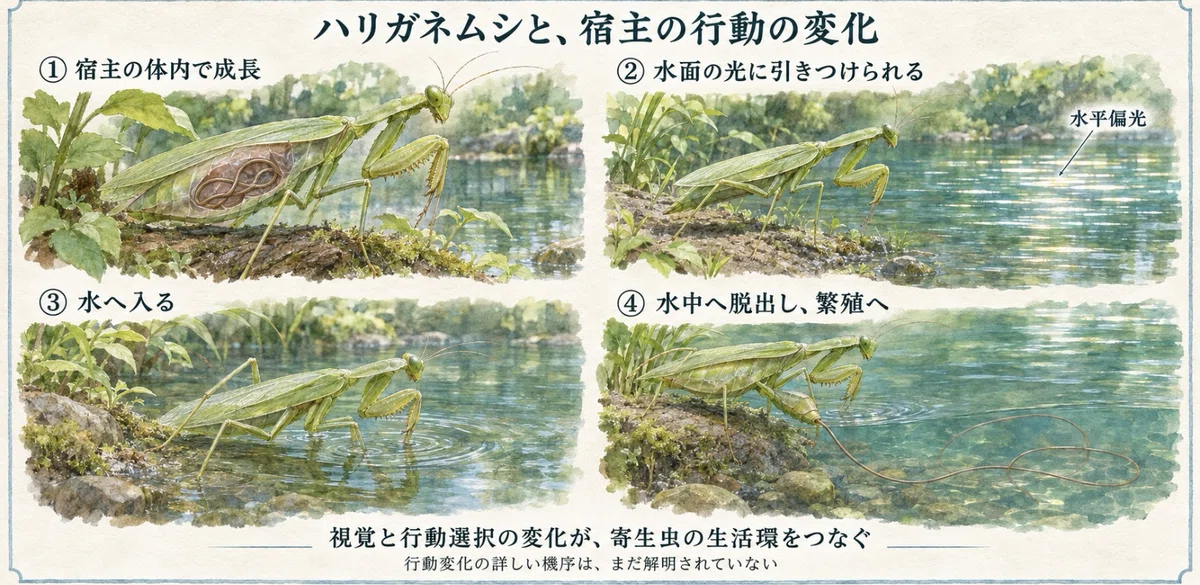
寄生虫が宿主の脳を、人形のように直接操っているのである。詳しい機序はまだ分かっていないが、少なくとも宿主が本来備えている視覚と行動選択の仕組みに偏りを生じさせ、自分の生活環を完成させている。
セナガアナバチは、ゴキブリの神経節へ毒を注入し、自発的に歩き始める傾向を低下させる。 ゴキブリは完全に麻痺しているのではなく、適切に刺激されれば歩くことができる。 それでも自ら逃げようとしなくなるため、ハチは触角をくわえて巣穴まで連れていき、幼虫の餌として利用する。
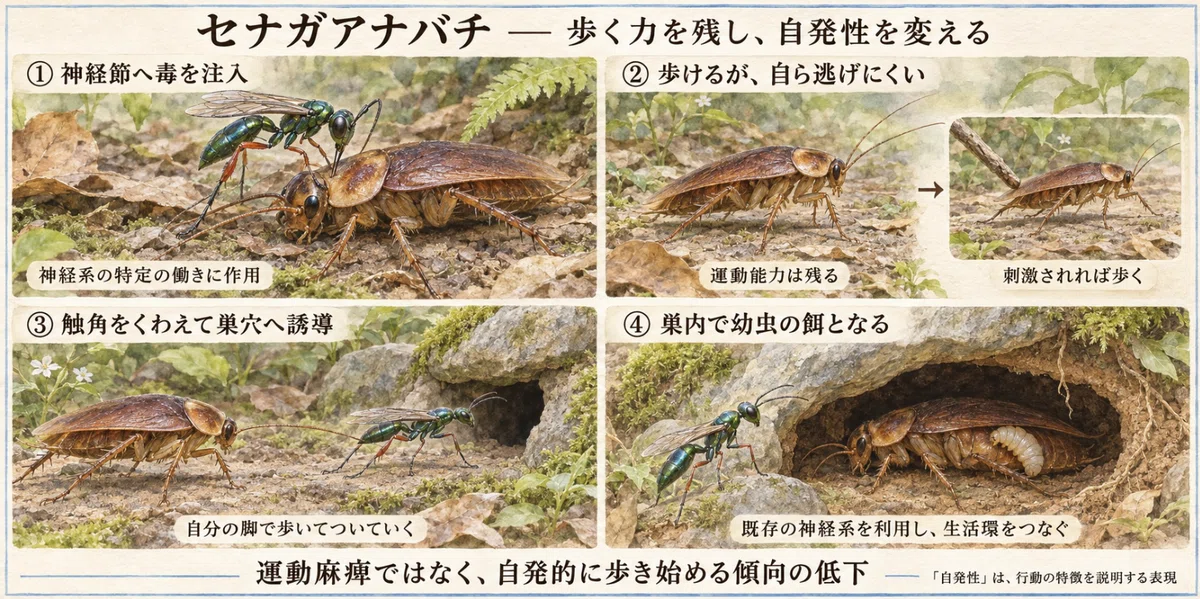
臨床的な言葉をあえて比喩として用いれば、運動麻痺よりも「自発性の低下」を連想させる。重要なのは、進化が宿主の運動装置を一から作り直すのではなく、すでに存在する神経系の特定の働きを利用していることである。
“時間”の中へ拡張する生命
生命の拡張は、空間だけでなく時間にも及ぶ。 北米の13年ゼミと17年ゼミは、幼虫として地中で長い年月を過ごした後、地域ごとにほぼ同時に地上へ現れる。成虫期は数週間しかなく、その間に交尾と産卵を終える。大量発生すると捕食者は食べきれなくなり、一定数が必ず生き残る。
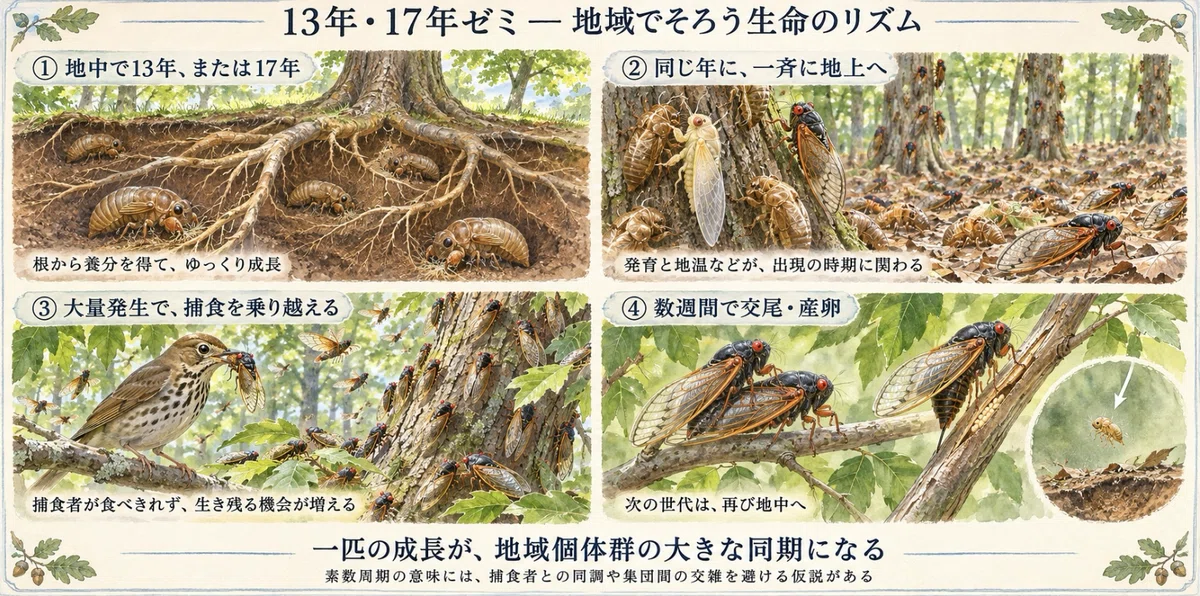
13と17という素数周期については、周期的に増える捕食者との同調や、異なるセミ集団との交雑を避けやすいという仮説がある。 このセミを一匹ずつ見れば、大半の時間を地中で過ごす奇妙な昆虫にすぎない。 しかし地域個体群として見れば、それは13年または17年に一度だけ地上へ姿を現す、長周期の生命現象である。個体の体内時計だけでなく、発生速度、地温、同じ年に生まれた仲間の存在が組み合わさり、巨大な同期がつくられる。
アブラムシでは、時間の重なり方がさらに独特である。 春から夏の雌は、雄との交尾を経ずに単為生殖で娘を産む。母の体内にいる娘胚の内部では、すでに孫世代の胚が発生し始めていることがある。三世代が入れ子状に存在するのである。 また、母親が混雑や餌不足などを経験すると、移動に適した翅のある子が生じやすくなる。
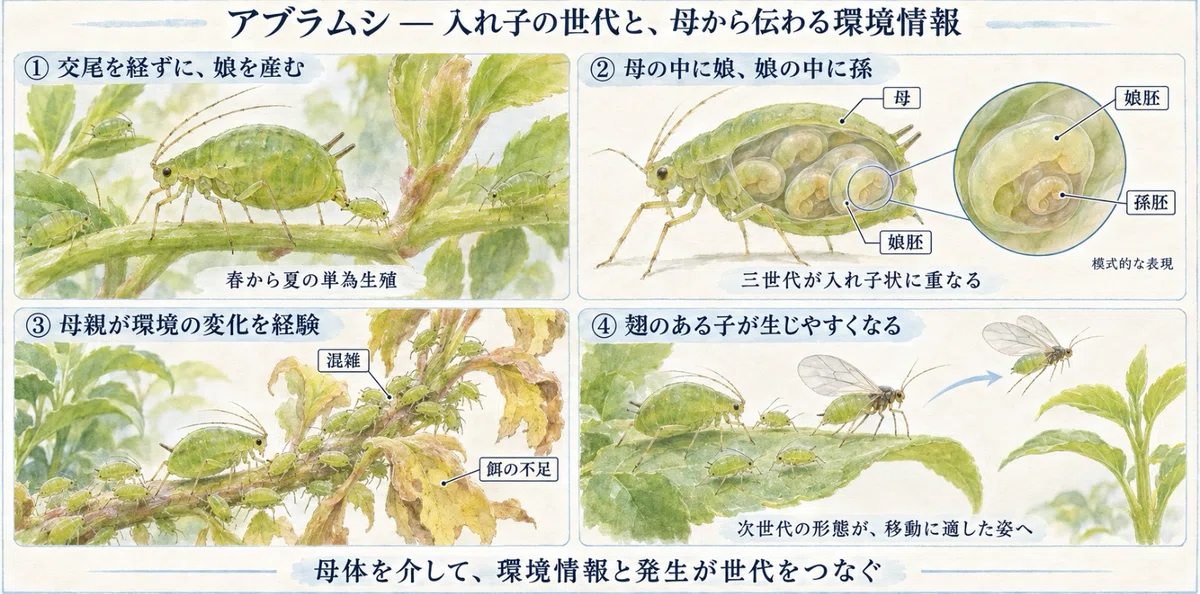
環境情報は母体を通して次世代の形態へ翻訳される。ここでも生命は、一世代ごとに切断されたものではなく、世代間を連続して流れる情報と発生の過程として現れる。
一個体が知らない道を、“世代”を超えた集団が知っている
その代表が、北米を移動するオオカバマダラである。 春になると、メキシコ中部の森林で越冬した成虫が北へ向かい、途中で産卵する。その子孫はさらに北上し、数世代をかけて米国北部やカナダへ到達する。 秋に生まれる「渡り世代」は、それまでの夏世代よりはるかに長く生き、数千キロメートルを南下してメキシコの限られた越冬地へ向かう。 そこで冬を越し、翌春に北帰行を始めるが、その個体が出発地点まで戻るわけではない。旅の続きを担うのは次の世代である。
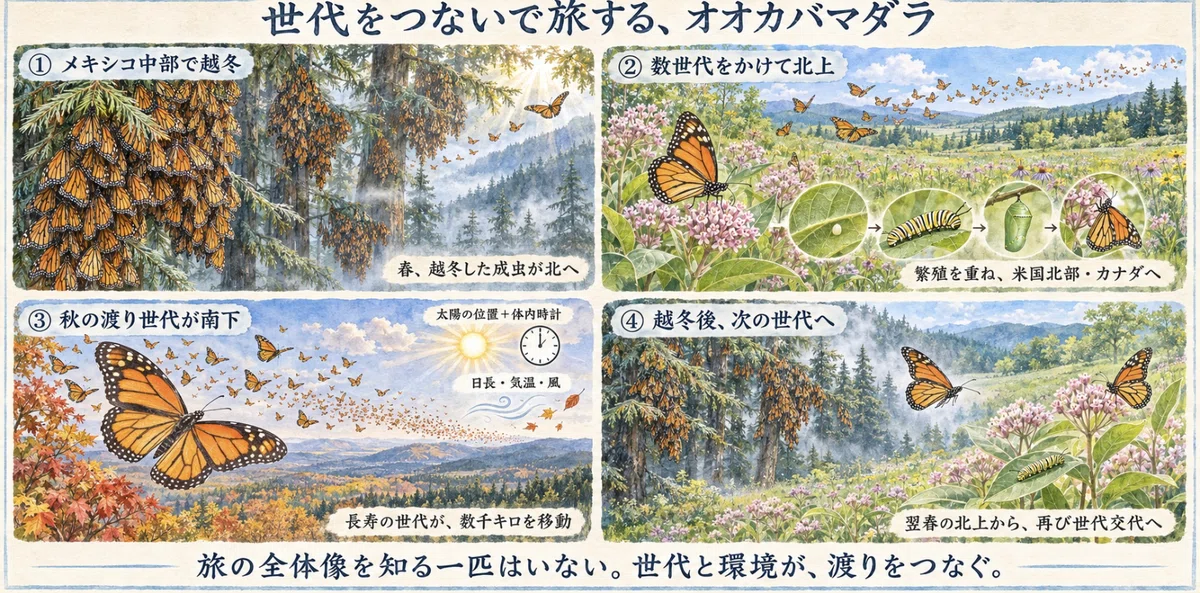
ここで不思議なのは、渡り世代が目的地を一度も見たことがない点である。 親から道順を教わることもない。それでも太陽の位置と体内時計を組み合わせた「太陽コンパス」、日長、気温、風などの情報を利用して、集団として一定方向へ進む。 もちろん、遺伝子の中にメキシコまでの地図が絵のように保存されているわけではない。遺伝的に形成される感覚・神経・内分泌の仕組みが、季節ごとの環境信号を読み取り、ある時期には繁殖を抑えて移動を優先し、別の時期には繁殖へ切り替えるのである。 したがって、渡りの全体像を知っている個体は存在しない。 それぞれの個体が持つのは、旅の一部分を実行する能力だけである。しかし世代をつないで眺めれば、個体群全体が一つの長い記憶を持っているように見える。ここでいう記憶とは、誰かが風景を思い出すという意味ではない。 遺伝的傾向、身体の状態、環境からの合図が結びつき、毎年ほぼ同じ生活環を再構成する「分散した記憶」である。 [詳しくは、コラム世代を越えて完成する渡り 〜オオカバマダラ、4000kmの旅を、参照下さい。]
同様の現象はヒメアカタテハにも見られる。 この小さな蝶は、ヨーロッパとアフリカの間を複数世代で往復し、年間の循環は一万キロメートルを大きく超える。 ウスバキトンボにも、インド亜大陸からモルディブを越え、東アフリカ方面へ連なる世代交代型の移動が提案されている。
一匹の昆虫は短命でも、世代の連鎖として見れば、巨大な大陸間移動を続ける存在になる。生命の単位を「一匹」から「受け継がれる生活環」へ移すと、初めて見えてくる姿である。
誰が命の旅を、計画しているのか
こうした生態を説明するとき、「蝶はメキシコを目指すために太陽を読む」「ウナギは新月を選ぶ」「寄生虫は宿主を操る」といった目的を持つ表現を使いたくなる。 しかし進化は、将来を見通して設計を行う主体ではない。偶然に生じた形質のうち、その環境でより多くの子孫を残すものが世代を越えて蓄積された結果として、現在の精巧な生活環が成立している。
しかも、必要な情報が一か所に集められているわけではない。 ウナギの分布は、産卵行動だけでなく海流による幼生輸送に左右される。 サンゴの一斉産卵は、体内の分子時計と月光や水温との相互作用から生まれる。 ハリガネムシの繁殖は、宿主の感覚器と水面の光学的性質に依存する。 蝶の進行方向は、遺伝的傾向だけでなく、太陽、体内時計、風、気温によって決まる。
行動を決める「司令塔」が生命全体を統括しているのではなく、複数の仕組みが局所的な規則に従うことで、全体として秩序ある生活環が立ち現れるのである。
この意味で「拡張された生命」とは、神秘的な集合意識を想定させる。 生命を成立させる情報処理と機能が、個体の脳や遺伝子だけに閉じておらず、世代間の継承、他種との関係、環境の周期性へ分散しているという見方である。 生物は環境から独立して存在し、後からそれに適応するだけではない。環境の規則性を自らの生活環の中へ取り込み、それによって初めて一つの生物として存続できる。
生物を守るとは、関係を守ることである
この視点は、生物多様性の保全にも重要な意味を持つ。 ニホンウナギを守るには、河川環境を改善するだけでも、産卵海域だけを保護するだけでも足りない。川と海の連続性、海流、沿岸の成育場、漁獲圧を一つの生活環として考える必要がある。
オオカバマダラでは、成虫だけでなく、幼虫が食べるトウワタ、移動途中で蜜を得る場所、越冬する森林、各地域をつなぐ渡り経路を守らなければならない。
淡水二枚貝を守るには、その幼生が利用する特定の魚種が必要である。
サンゴ礁では、夜間照明が月光の手掛かりを乱し、産卵の同期を崩す可能性が示されている。
気候変動によって開花、昆虫の羽化、鳥の渡来時期が別々の速度で変化すれば、これまで一致していた捕食、受粉、繁殖の関係が外れてしまう。絶滅とは、ある個体がいなくなることだけではない。その生物を成立させていた関係の網が切れ、生活環を再現できなくなることでもある。
私たちの目には、一匹の蝶、一尾のウナギ、一匹のカマキリが、それぞれ独立した生命として映る。 しかし視野を広げれば、一個体は長大な過程の一時的な結び目にすぎない。前の世代から情報を受け取り、他の生物と関係を結び、月や季節や海流の力を借りて、次の世代へ何かを渡していく。
生命は、皮膚や外骨格の内側だけに存在するのではない。それは世代を越え、他者の身体を通り、地球の周期に支えられて持続する。 生物とは自己完結した「点」ではなく、時間と空間の中に引かれた「線」である。そして無数の線が重なり合うところに、生態系というさらに大きな生命の風景が現れるのである。
この内容にご興味がある方は、こちらのnotoサイト:https://note.com/mentlmap も是非ご覧ください。